Аэродинамика компромисса: козодой
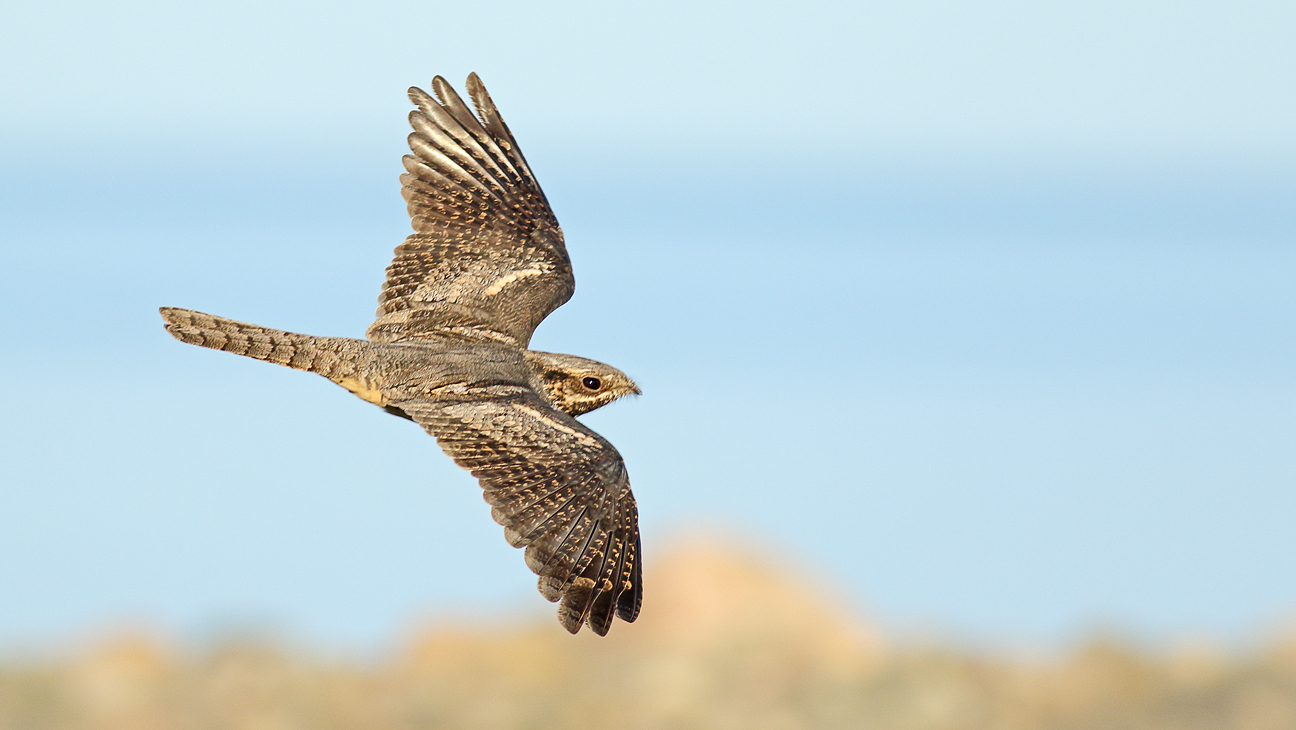
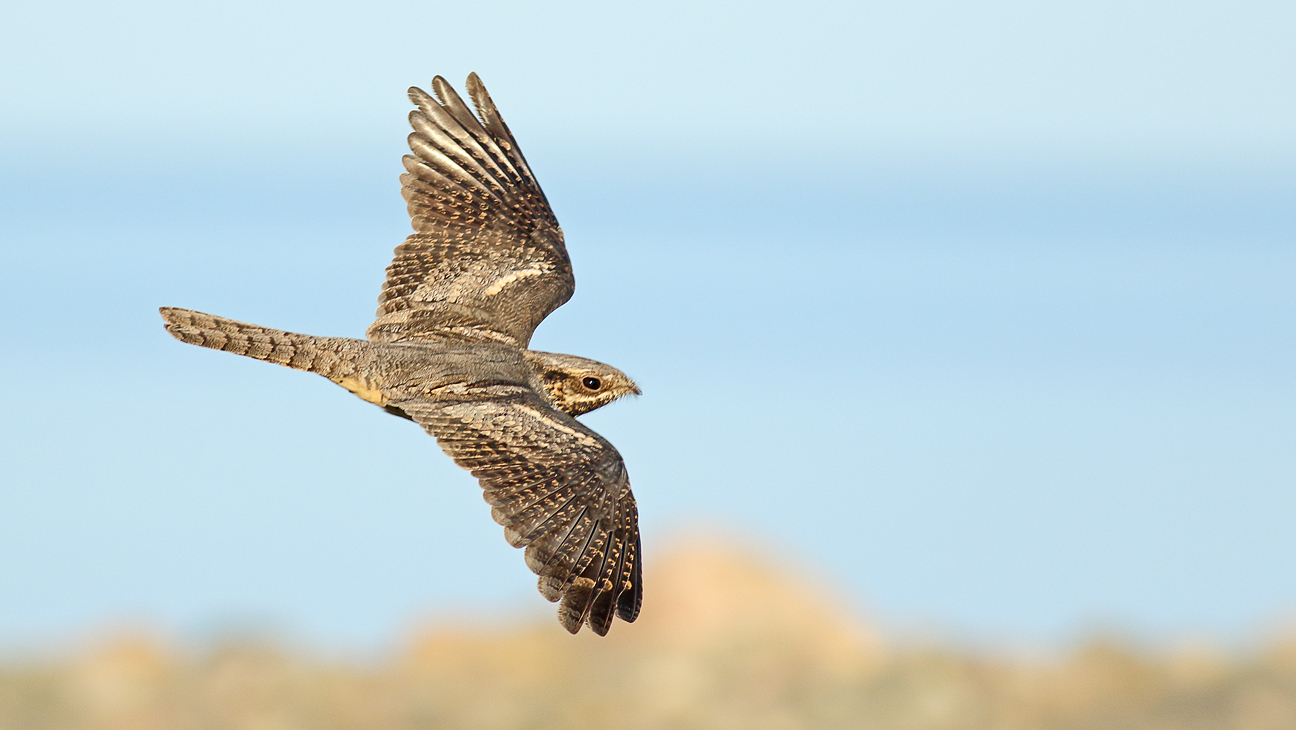
Со времен древности человек смотрел на птиц, с легкостью покоряющих небеса, с восхищением и завистью. Поэты воспевали пернатых летунов в своих стихах, художники пытались передать грацию и силу птиц, а пытливые умы пытались ответить на вопрос — как и почему птицы могут летать? Научный взгляд на полет птиц хоть и не позволил нам самим летать в буквальном смысле, но ознаменовал создание устройств, способных на это. С развитием технологий и научных методик мы получили возможность более детального рассматривать полет птиц и все его аспекты не только с точки зрения орнитологии, но и метеорологии, навигации, аэродинамики, биомеханики и даже бионики. Ученые из Лундского университета (Лунд, Швеция) провели исследование полета обыкновенного козодоя, в ходе которого установили крайне необычные его особенности. Что необычного в технике полета козодоя, и как это может быть использовано в авиации робототехнике? Ответы на эти вопросы мы найдем в докладе ученых.
Основа исследования
Способность к активному полету открыла перед птицами новые экологические ниши и позволила им освоить разнообразные формы поведения — от питания нектаром в режиме зависания до совершения дальних миграций. В связи с этим у разных видов птиц наблюдается значительное разнообразие форм крыльев и стилей полета. Сочетание формы крыла (морфологии) и характера его движения (кинематики) определяет аэродинамические характеристики — величину, направление и энергетику создаваемой подъемной и движущей силы. Вопрос о том, как взаимодействие этих факторов направляет эволюцию межвидовых различий, остается одной из важных нерешенных проблем биологии. Различия в удельной нагрузке на крыло (отношение массы тела к площади крыльев) и форме крыла (например, соотношение длины дистальной части крыла к размаху, удлинение крыла — отношение его длины к хорде, а также распределение хорды по размаху) часто коррелируют с особенностями стиля полета у разных видов. Однако перед каждым видом могут стоять специфические задачи, обусловленные его образом жизни, что нередко приводит к необходимости поиска компромиссных решений. Изучая, как отдельные виды справляются с этими противоречивыми требованиями, ученые могут получить ключ к пониманию относительной «стоимости» (затрат) тех или иных эволюционных решений.
Аэродинамические и механические затраты при полете определяются тремя составляющими мощности: мощностью, затрачиваемой на преодоление паразитного сопротивления, профильного сопротивления и индуктивного сопротивления. Первые две составляющие связаны, соответственно, с характеристиками тела и крыльев и преобладают при высоких скоростях полета, тогда как мощность, затрачиваемая на преодоление индуктивного сопротивления, связана с созданием подъемной силы и играет основную роль при низких скоростях полета. Профильное и индуктивное сопротивление, помимо прочего, зависят от размера и формы крыльев. У животных, летающих с помощью взмахов крыльев, параметры (размер и форма), минимизирующие профильное сопротивление, и параметры, минимизирующие индуктивное сопротивление, не всегда совпадают. Это означает, что животные, адаптированные преимущественно к медленному полету, должны иметь крылья иной формы, чем те, что приспособлены преимущественно к быстрому полету. Однако у видов, которым по экологическим причинам приходится летать в широком диапазоне скоростей и режимов, можно ожидать не только компромиссов в морфологии крыла, но и применения различных кинематических стратегий, направленных на оптимизацию аэродинамических характеристик. Изучение видов, способных летать в широком диапазоне скоростей, позволяет лучше понять адаптации и ограничения, свойственные полету животных. В данной работе представлены результаты исследования одного из таких видов — обыкновенного козодоя.
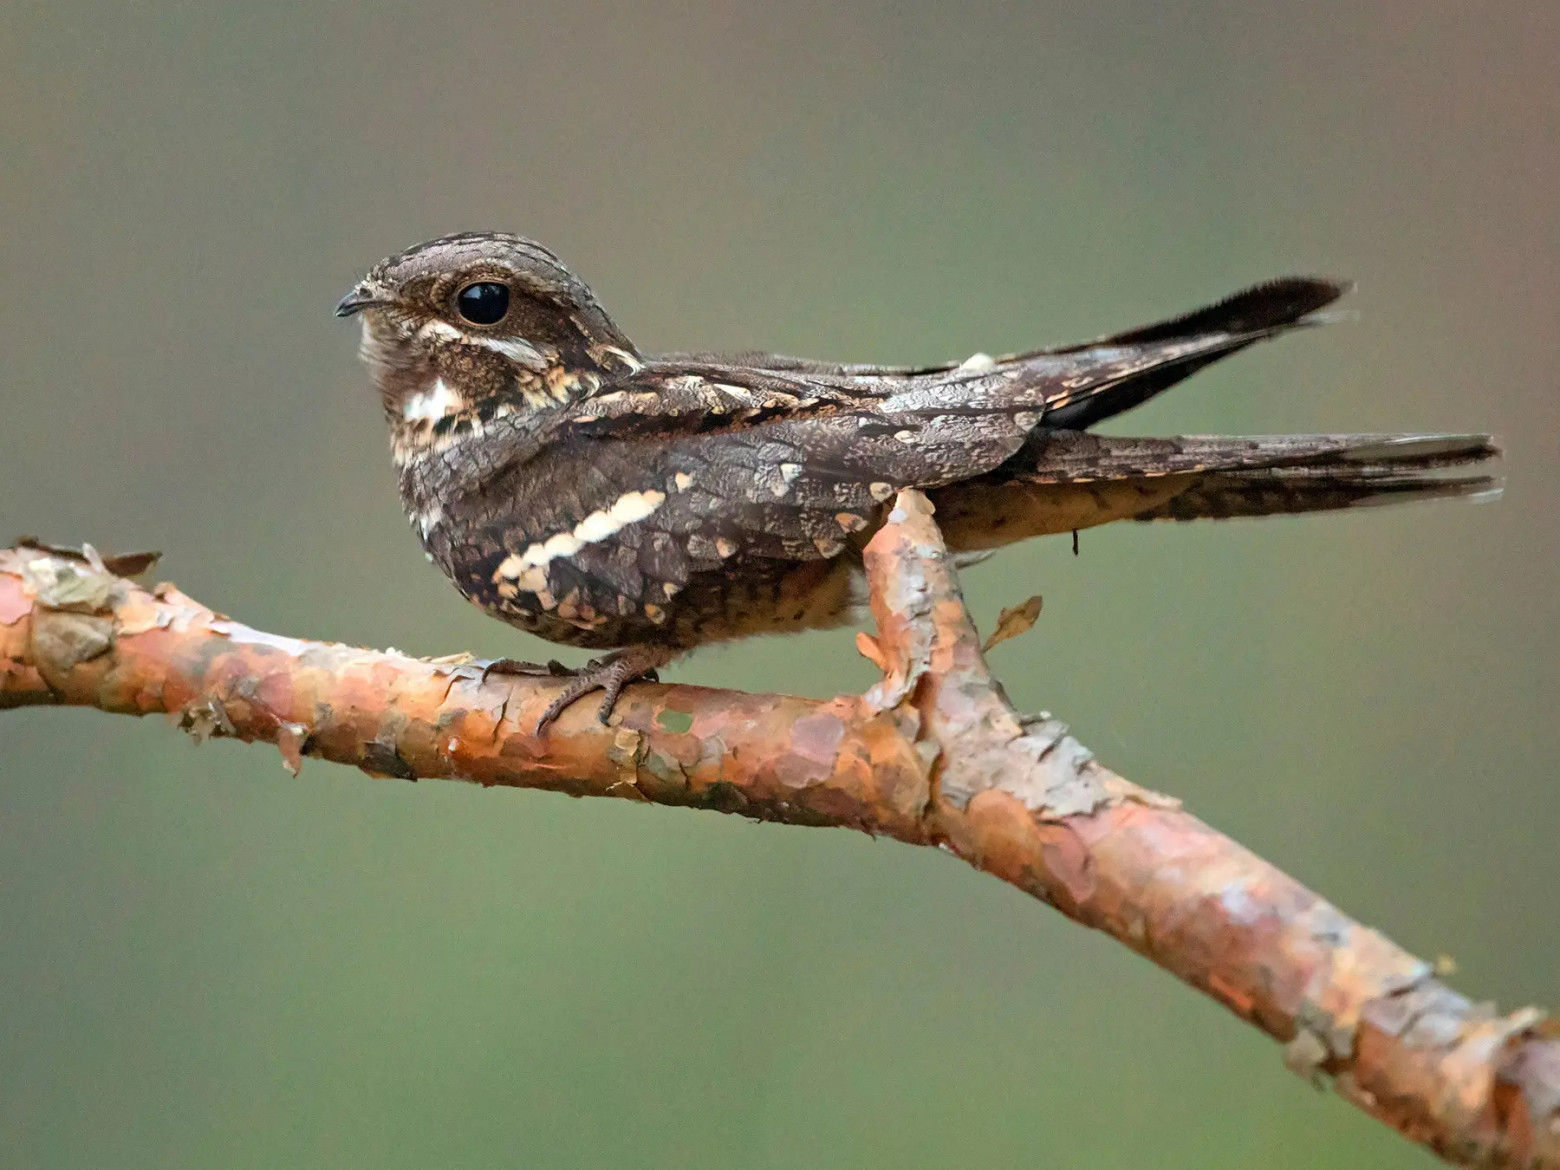
Обыкновенный козодой (Caprimulgus europaeus) — загадочный вид птиц, выделяющийся сочетанием размера и формы крыльев, а также особенностями полета. Эта перелетная птица, совершающая дальние миграции, ведет сумеречный образ жизни и питается насекомыми, которых ловит на лету. В светлое время суток козодой неподвижно отдыхает — зачастую прямо на земле, где он также устраивает гнездо, — а в сумерках охотится. Такой образ жизни требует способности летать в широком диапазоне скоростей: медленно — во время охоты (птица даже способна зависать в воздухе без помощи ветра) и быстро — во время миграционных перелетов. Поскольку для этих двух режимов полета оптимальными являются разные формы крыльев и характер взмахов, а сами крылья козодоя имеют весьма необычное строение, этот вид представляет большой интерес для аэродинамических исследований.
Для птицы, способной летать очень медленно и даже подолгу зависать в воздухе, козодой отличается относительно большой массой (71 ± 11.7 г). При такой массе его крылья — длинные и крупные, а также довольно узкие: их удлинение (отношение размаха крыла к его средней хорде) составляет 7.5 (у птиц этот показатель обычно варьирует от 4 до 15). В отличие от большинства птиц с крыльями, имеющими относительно высокое удлинение, у козодоя кончики крыльев сравнительно широкие — это также отличает его от многих видов, специализирующихся на зависании в воздухе, например, колибри. Учитывая размеры козодоев, можно предположить, что широкие кончики крыльев служат адаптацией, позволяющей поддерживать массу тела при медленном полете: они увеличивают хорду той части крыла, которая движется в воздушной среде с наибольшей скоростью. Впрочем, такие широкие кончики могут приводить к увеличению профильного сопротивления (обусловленного силами трения), а также к росту индуктивного сопротивления из-за неравномерности нисходящего потока воздуха, что снижает эффективность крыла на высоких скоростях. В данной работе ученые исследовали, как эти адаптации, предназначенные для медленного полета, влияют на эффективность движения птицы при крейсерской скорости.
Чтобы исследовать, как форма крыла козодоя и кинематика взмахов крыльев влияют на аэродинамику, ученые провели измерения вихрей в следе за птицей, а также определили мощность, необходимую для полета в различных скоростных режимах. На основе данных о вихревом следе ученые вычислили аэродинамическую мощность и сопоставили ее со значениями, предсказанными моделью машущего полета. Кроме того, ученые рассчитали ряд показателей эффективности, чтобы оценить, как при изменении скорости полета меняется процесс создания аэродинамической силы и как соответствующим образом трансформируется трехмерная кинематика движений.
Результаты исследования
Ученым удалось собрать данные по трем особям. Количество наблюдений (полетов) для каждой из них варьировалось от 78 до 212 в зависимости от рассматриваемой переменной. Структура спутного следа (вихрей) менялась в исследованном диапазоне скоростей полета (2.6–11 м/с), причем наиболее заметные различия наблюдались при сравнении минимальной скорости с остальными значениями.
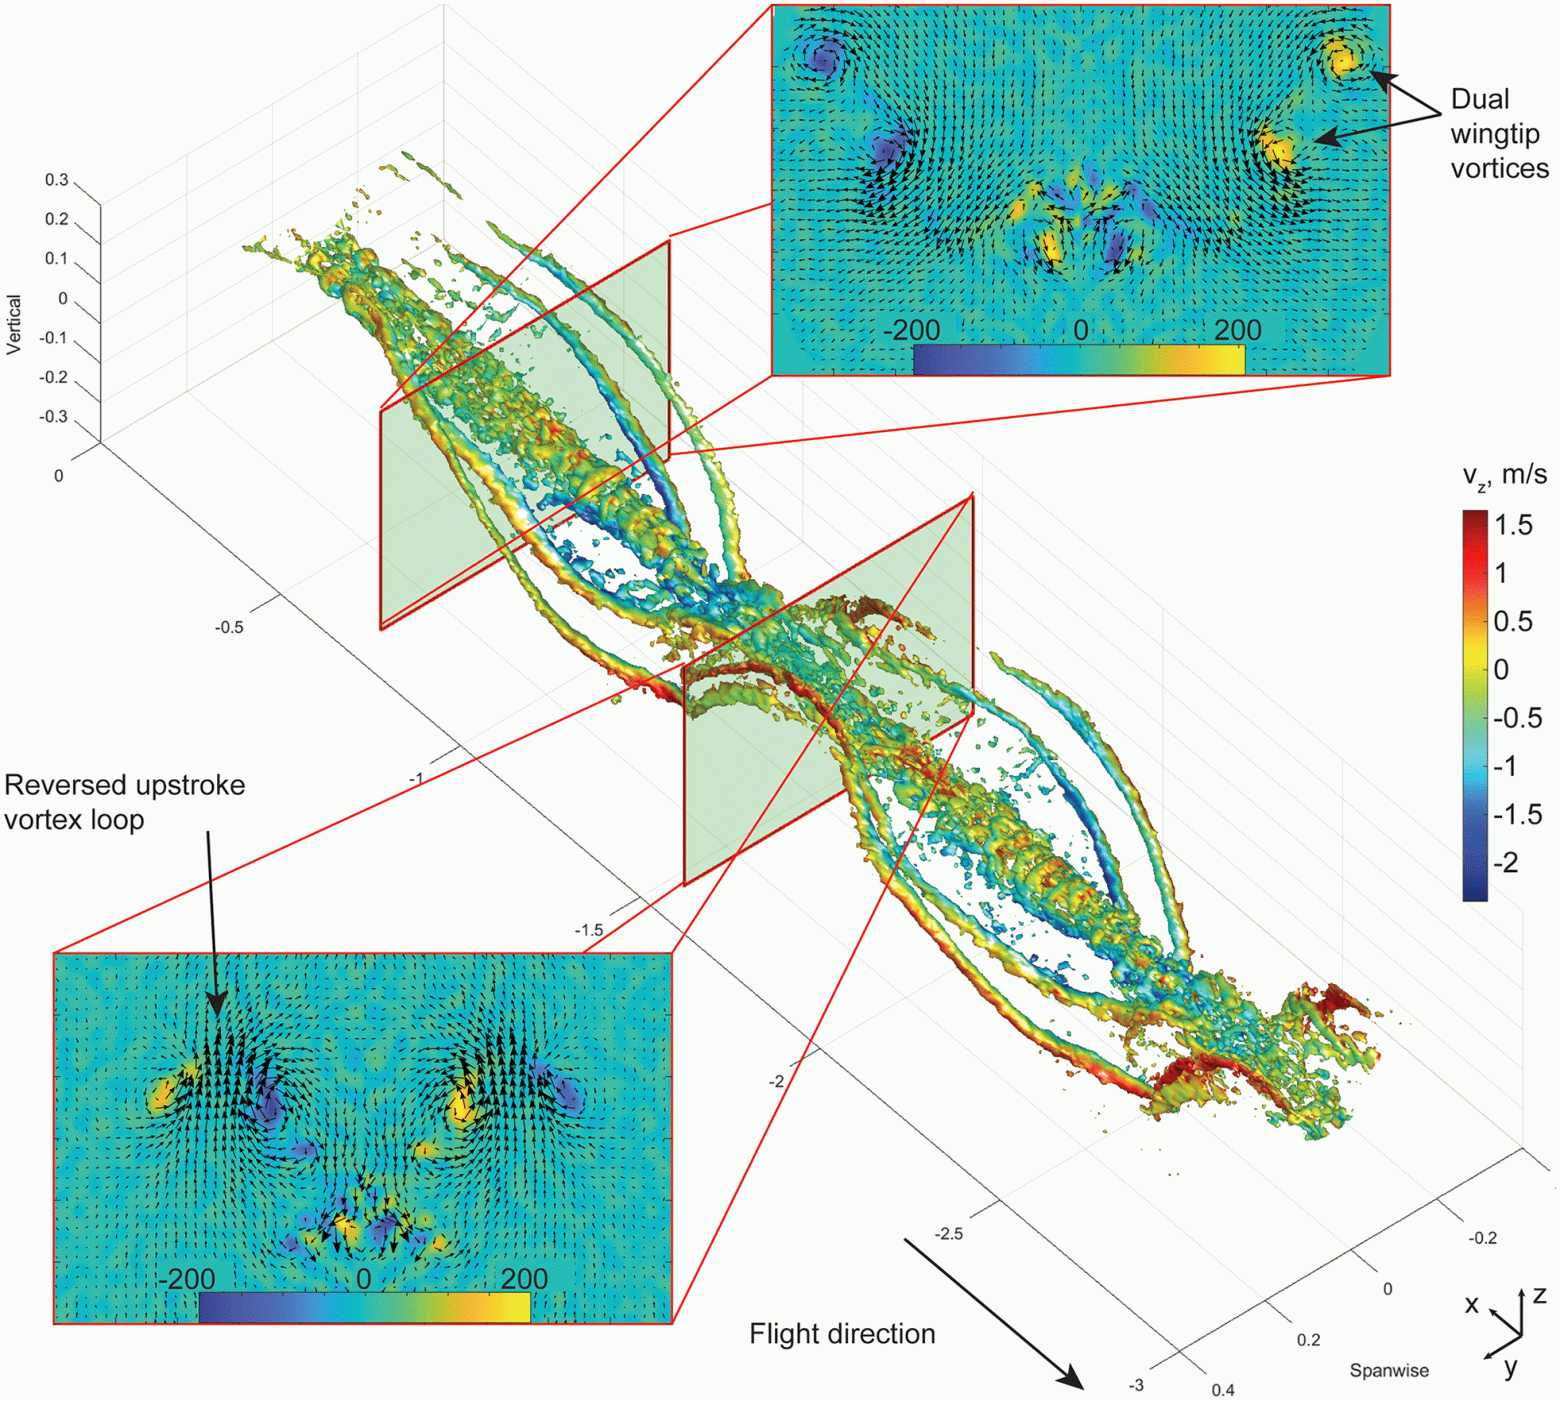
Изображение №1
На крейсерских скоростях (то есть при скорости, соответствующей минимальной затрачиваемой мощности, и выше) в спутном следе прослеживались волнообразные вихри (характерная особенность машущего полета), однако в данном случае присутствовали два необычных элемента. В частности, были выявлены двойные концевые вихри, возникающие при движении крыла вниз (взмахе вниз), а также обратные вихревые петли, формирующиеся у внешних участков крыльев в конце взмаха вверх (диаграмма выше). Эти обратные вихревые петли были связаны с восходящим потоком воздуха и имели такой наклон, который указывает на создание крылом тяги (диаграмма выше и 2a).
При минимальной скорости полета доминировал один концевой вихрь. Иногда рядом с ним возникали более слабые вихри, которые зачастую смещались под воздействием индуцированного потока. На этой скорости структура спутного следа при взмахе вверх была более сложной, чем при взмахе вниз. Во время взмаха вверх внутренняя часть крыла перемещалась вперед относительно неподвижного воздуха, тогда как дистальная часть крыла (кистевой отдел) двигалась назад — из-за того, что скорость ее движения при взмахе превышала скорость поступательного полета. В результате спутный след от взмаха вверх взаимодействовал со следом от предыдущего взмаха вниз, а крыло при последующем взмахе вниз проходило сквозь след, оставшийся от предыдущего взмаха вверх. Это значительно усложнило интерпретацию структуры спутного следа. Тем не менее во второй половине взмаха вверх внешняя часть крыла отчетливо формировала вихревую петлю, свидетельствующую о создании тяги (что подтверждается наличием индуцированного потока, направленного назад). В этот же момент в кинематике движения крыла наблюдается характерное «веерообразное» движение с наклоном передней кромки вниз. Соответственно, на протяжении большей части взмаха вверх от внешней части крыла отходил поток, направленный назад, что также указывает на генерацию тяги.
Кинематика указывала на наличие циркуляции противоположных знаков во внутренней и внешней частях крыла во время движения вверх. Кроме того, на видеозаписях было заметно образование просвета между второстепенными маховыми перьями в средней части крыла. Это давало основания ожидать появления вертикально ориентированного вихря в данной области размаха крыла, однако в спутном потоке отчетливого вертикального вихря обнаружено не было. Тем не менее спутный поток от внутренней части крыла во время движения вверх характеризовался высокой сложностью и изменчивостью (вероятно, вследствие больших углов атаки), а на видеозаписях было видно, что кроющие перья приподнимались над поверхностью крыла — признак низкого давления и, возможно, отрыва потока, сопровождающегося слабой циркуляцией и высоким лобовым сопротивлением.
Изображение №2
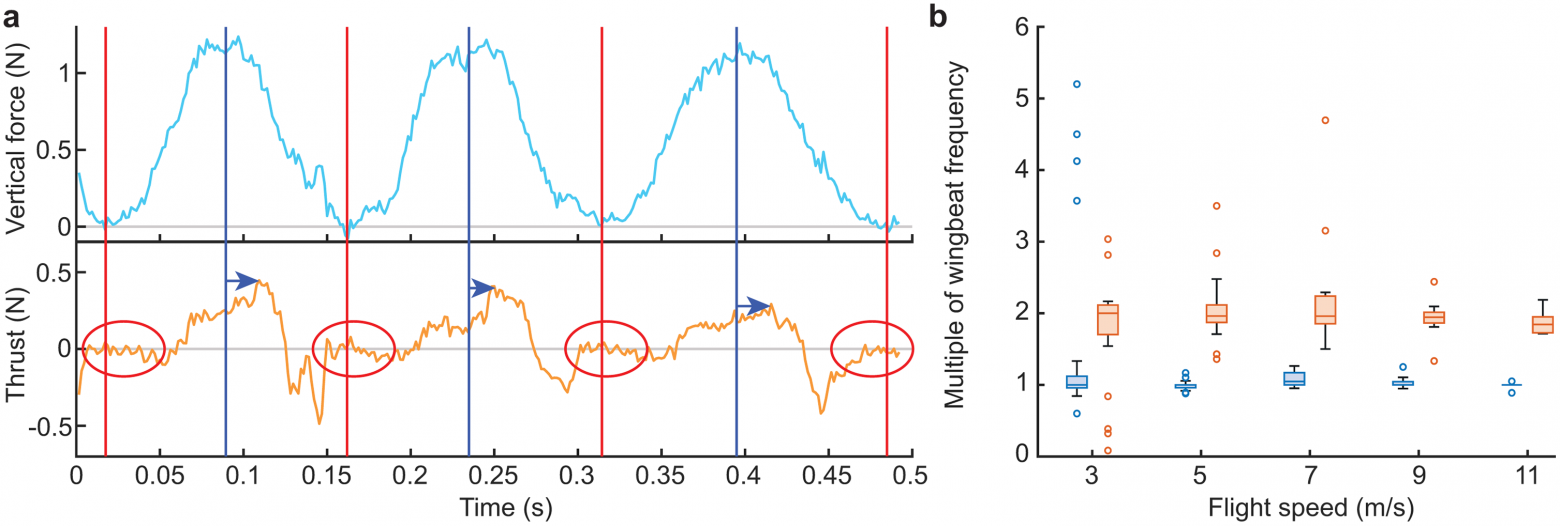
При различных скоростях полета основная часть вертикальной силы (FV) создавалась во время движения крыла вниз (опускания), при этом пик тяги (T) достигался позже момента возникновения пиковой вертикальной силы (2a). Минимальное значение вертикальной силы в течение одного взмаха крыльев приходилось на фазу движения крыла вверх (подъема) и совпадало со вторым пиком тяги (или минимумом отрицательной тяги) (2a). Согласно результатам фурье-анализа тяги во времени, второй по величине пик составлял в среднем ~45% от мощности основного (наибольшего) пика и при всех скоростях полета соответствовал удвоенной частоте основного пика (то есть удвоенной частоте взмахов крыльев) (2b). Таким образом, полученные результаты показывают, что в течение одного взмаха крыльев тяга зачастую имеет два пика.
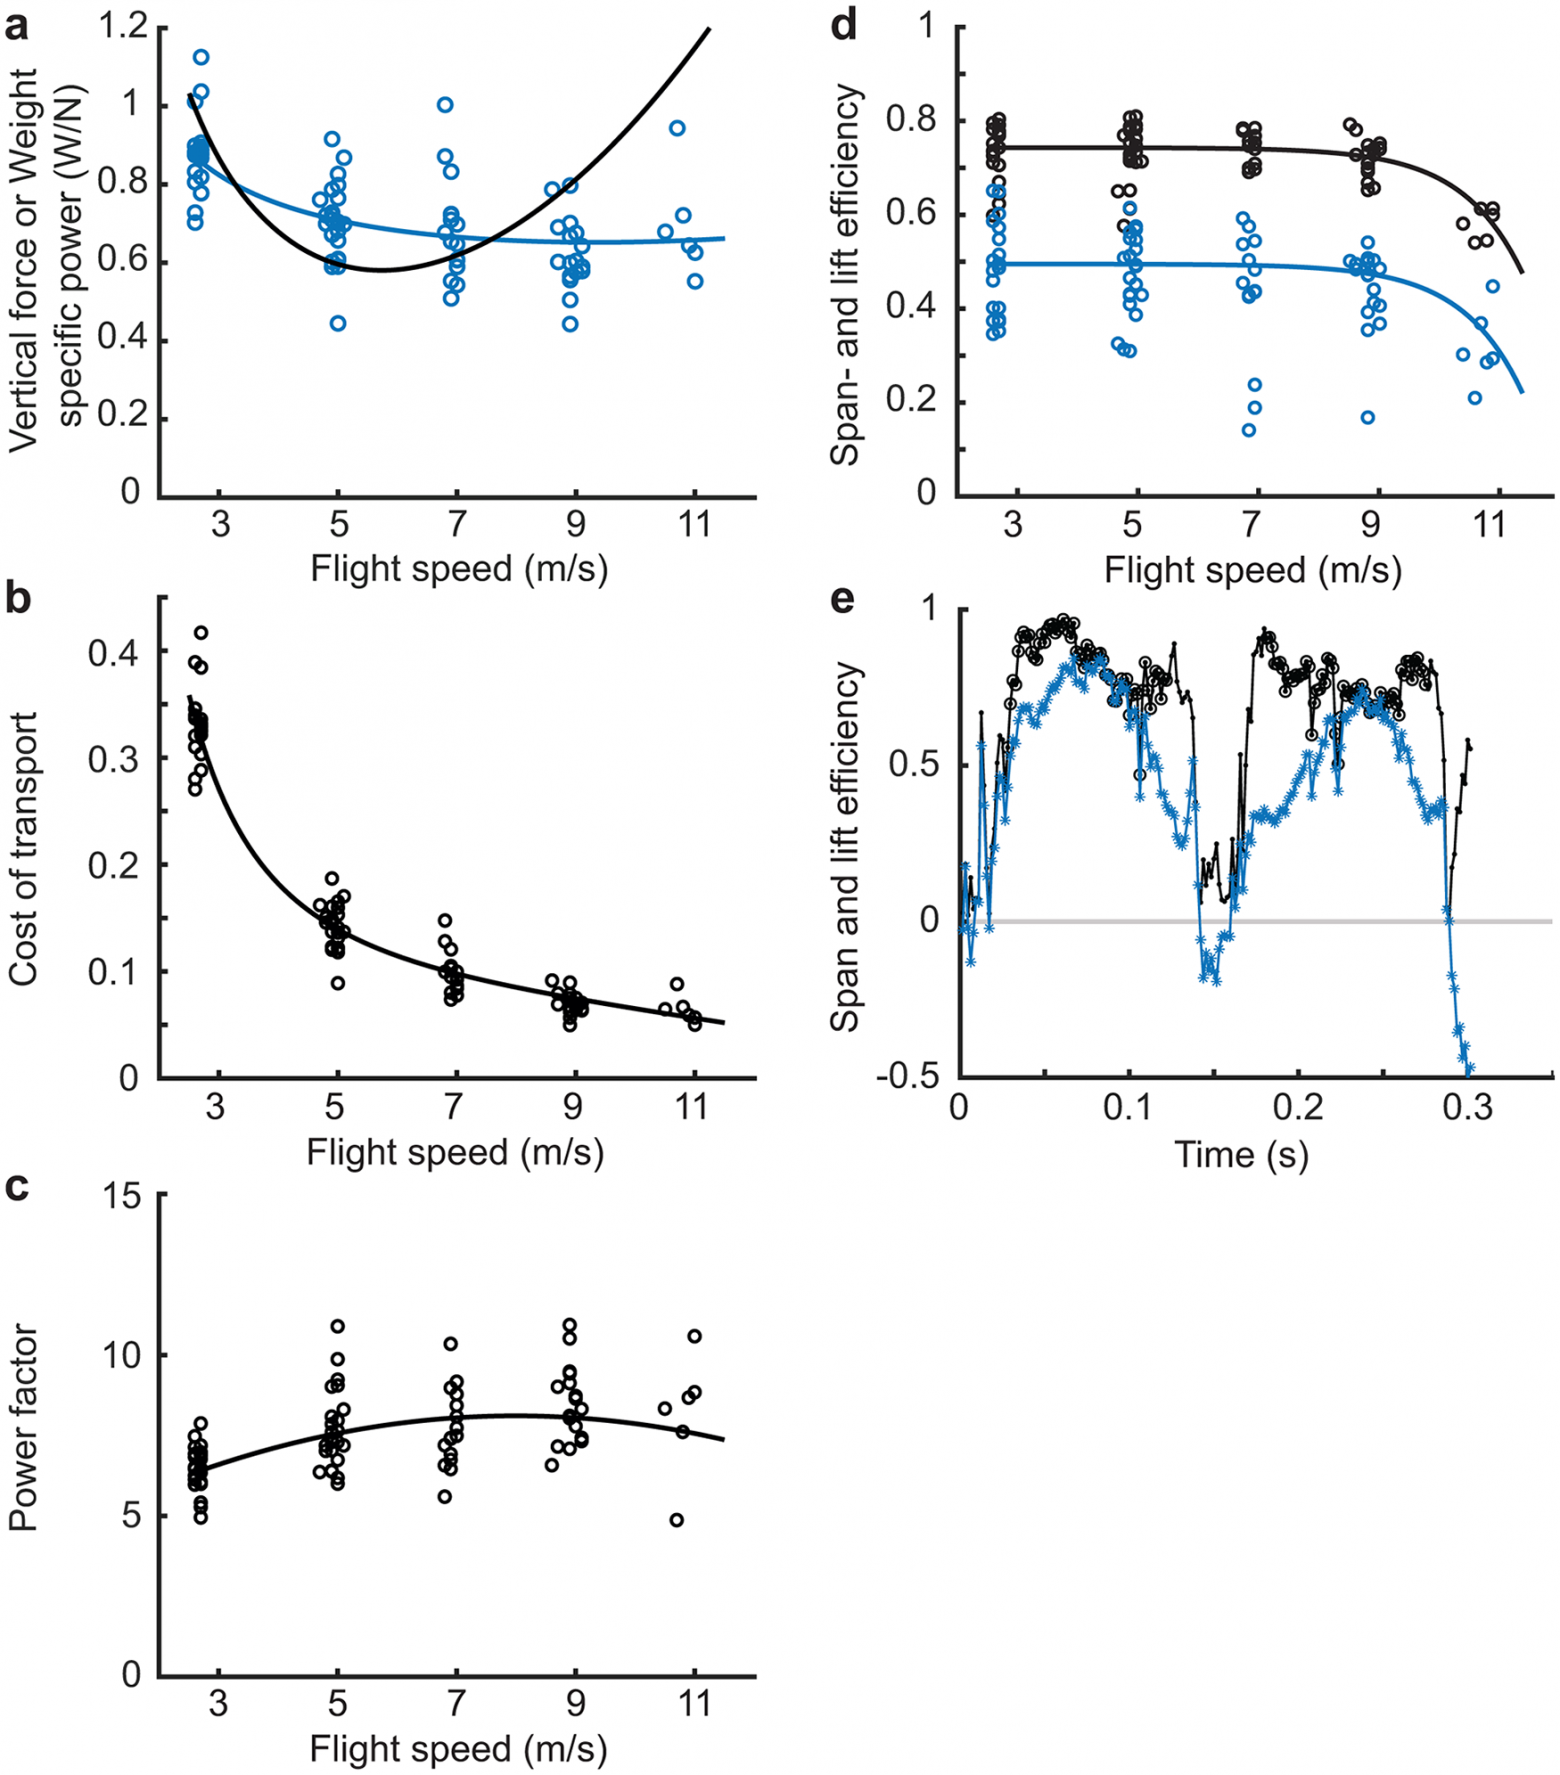
Мощность §, нормализованная по вертикальной силе (FV), варьировала в диапазоне от 0.44 до 1.13 Вт/Н и изменялась в зависимости от скорости по U-образной кривой (P/FV = 0.90/U∞ + 3.92·10−5U3∞ + 0.524), при этом минимальное значение мощности (0.65 Вт/Н) достигалось при скорости около 9.3 м/с (3a). По сравнению с теоретической моделью, данная кривая имеет более пологую U-образную форму: как при самых низких, так и при самых высоких скоростях фактические значения мощности оказались ниже расчетных (3a).
Изображение №3
Оба показателя эффективности, стоимость перемещения (COT от cost of transport) и коэффициент мощности (PF от power factor), продемонстрировали рост эффективности по мере увеличения скорости полета (COT = 1.78/U2∞ + 2.76·10−4U2∞ + 0.0750; 3b; PF = 4.24 + 0.969U – 0.0606U2∞; 3c), при этом возможный максимум достигается при скорости ~8 м/с. С другой стороны, коэффициент эффективности размаха крыла (ei) в фазе опускания крыла составил в среднем 0.72 и снижался с ростом скорости полета (ei = 0.743 – 2.72·10−6eU∞; 3d). Эффективность создания вертикальной силы (eiFV) оказалась ниже (0.45) и также уменьшалась с увеличением скорости (eiFV = 0.495 – 2.79·10−6eU∞; 3d). В течение одной фазы опускания крыла коэффициент эффективности размаха оставался относительно постоянным, тогда как эффективность создания вертикальной силы варьировалась, достигая пика в середине этой фазы (3e).
Изображение №4
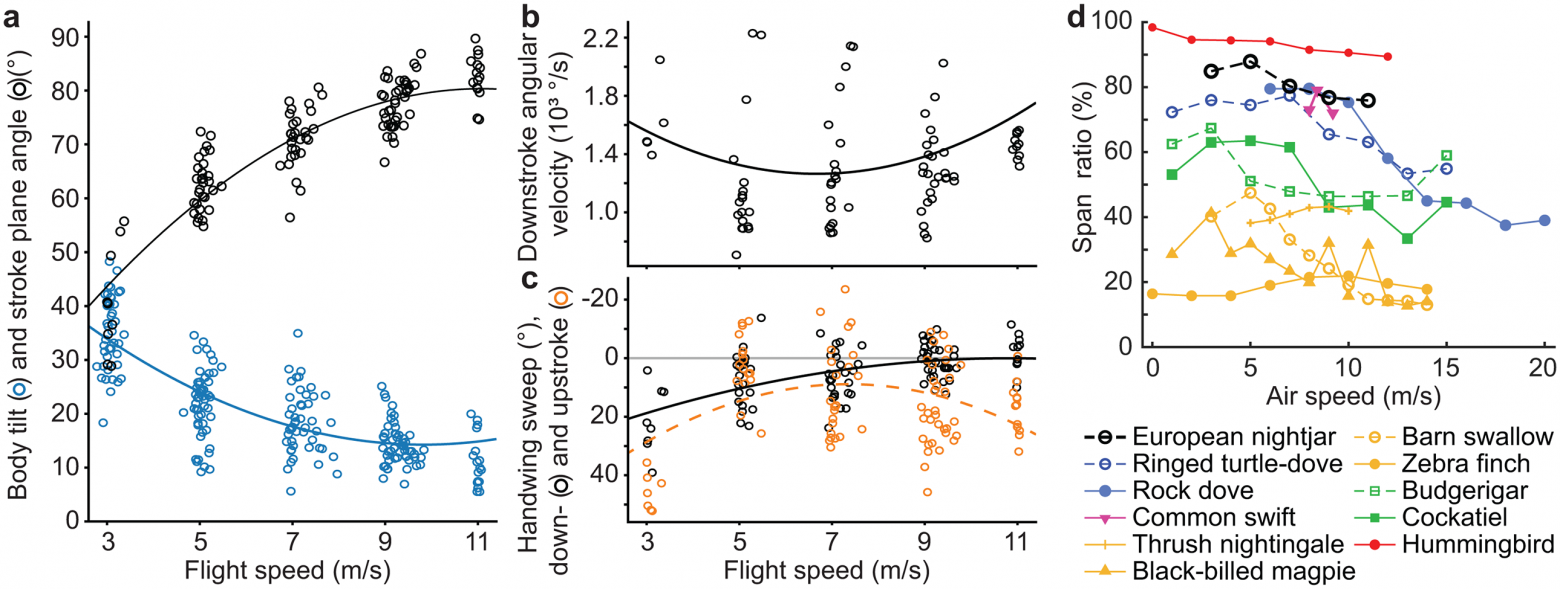
Регулирование соотношения тяги и весовой нагрузки, необходимое при изменении скорости полета, может осуществляться несколькими способами. Кинематический анализ показал, что козодои при изменении скорости полета корректируют как наклон тела, так и угол плоскости взмаха крыльев. По мере снижения скорости полета создание подъемной силы, компенсирующей вес птицы, становится более сложной задачей, требующей, чтобы взмах крыльев был направлен более горизонтально. В связи с этим птицы увеличивают угол наклона тела (угол наклона тела = 55.1 – 8.29U∞ + 0.422U2∞, 4a). Это приводит к увеличению угла атаки самого тела, а также способствует изменению наклона плоскости взмаха. При низких скоростях полета плоскость взмаха располагается менее вертикально, чем при высоких (угол плоскости взмаха = 11.3 + 12.5U∞ – 0.562U2∞, 4a), причем этот параметр меняется более заметно, чем угол наклона тела (4a). Ученые также выявили два дополнительных изменения, свидетельствующих об усилении компенсации веса на низких скоростях: увеличение угла наклона хвоста (угол наклона хвоста = 25.1 – 6.31U∞ + 0,356U2∞) и увеличение угла раскрытия хвоста (угол раскрытия хвоста = 104 – 5.23U∞).
Усилия, направленные на создание аэродинамических сил, связаны со скоростью взмахов крыла. При переходе от минимальных скоростей полета к максимальным наблюдается увеличение амплитуды взмахов (~37%) (амплитуда угла взмаха = 69.2 + 3.71U∞), сопровождающееся снижением частоты взмахов (~16%) (частота взмахов крыльев = 8.24 – 0.159U∞), в то время как доля времени, приходящаяся на движение крыла вниз (фазу опускания), остается относительно постоянной (доля фазы опускания = 0.527 – 0.00308U∞). В совокупности это приводит к тому, что скорость взмахов в исследованном диапазоне скоростей полета изменяется по U-образной кривой (средняя угловая скорость при движении крыла вниз = 2235 – 291U∞ + 21.8U2∞; 4b) с минимумом вблизи скорости полета 6.7 м/с.
Коэффициент размаха — это показатель того, насколько сильно крыло складывается во время взмаха вверх по сравнению со взмахом вниз. Этот коэффициент был высоким (~80%) и демонстрировал слабую выпуклую зависимость от скорости полета (коэффициент размаха = 0.925 – 0,0184U∞; 4d). У козодоев коэффициент размаха регулировался преимущественно за счет складывания проксимальной части крыла («плеча»), тогда как отклонение дистальной части крыла («кисти») во время взмаха вверх было незначительным (при опускании крыла = 54.1 + 6.63U∞ – 0.306U2∞; при подъеме крыла = 24.8 + 15.3U∞ – 1.04U2∞; 4c).
Для более детального ознакомления с нюансами исследования рекомендую заглянуть в доклад ученых и дополнительные материалы к нему.
Эпилог
В рассмотренном нами сегодня труде ученые уделили особое внимание аэродинамике полета европейского козодоя.
Европейский козодой (Caprimulgus europaeus) — ночной охотник, который ежегодно совершает грандиозное путешествие между Европой и югом Африки. Еще одной отличительной особенностью козодоев является их метод охоты — они ловят насекомых буквально в полете. В результате сталкиваются две противоположные летные концепции: быстрый полет на большие расстояния и медленный, но маневренный, полет во время охоты.
Авторы исследования выяснили, что эти противоречивые требования приводят к неожиданному компромиссу. Хотя строение козодоя приспособлено для длительных миграций, его крылья не являются идеально оптимизированными для эффективного полета на высоких скоростях.
Чтобы изучить особенности полета козодоев, ученые провели эксперименты в аэродинамической трубе: они фиксировали движения птиц на разных скоростях и анализировали потоки воздуха, возникающие за их крыльями.
Выяснилось, что широкие кончики крыльев, которые, вероятно, помогают птице маневрировать при медленном полете, становятся помехой при увеличении скорости. На высоких скоростях крылья козодоя создают подъемную силу менее эффективно. Эти результаты ставят под сомнение распространенное мнение о том, что птицы, преодолевающие огромные расстояния, должны обладать крыльями, оптимизированными прежде всего для максимально эффективного дальнего перелета.
Исследователи также выявили еще одну удивительную особенность полета козодоя. Даже во время подъема крыльев — фазы, называемой «восходящим взмахом», — птица продолжает создавать тягу, то есть силу, которая толкает ее вперед. Это необычно, поскольку столь активное движение крыльев вверх ранее связывали в основном с механикой полета летучих мышей и насекомых, а не птиц. Это открытие позволяет предположить, что животные с совершенно разной эволюционной историей могли выработать схожие аэродинамические решения для преодоления трудностей, связанных с полетом.
Полученные результаты дают более широкое представление о том, как эволюция формирует организмы, использующие одни и те же части тела для выполнения различных задач. Вместо того чтобы создавать крылья, идеально приспособленные для какой-то одной цели, эволюция может отдавать предпочтение конструкциям, которые находят баланс между несколькими противоречивыми потребностями. В случае с козодоем это означает сочетание способности к межконтинентальным миграциям с маневренностью, необходимой для охоты на насекомых на низких скоростях.
Понимание этих компромиссов может способствовать совершенствованию авиационных технологий — в частности, разработке беспилотников и других роботизированных летательных аппаратов, использующих машущие крылья. Подобно птицам, такие аппараты могут сталкиваться с механическими ограничениями, не позволяющими сильно складывать крылья во время каждого взмаха. Изучение того, как козодои создают тягу при движении крыла вверх, может помочь инженерам найти более эффективные способы перемещения в воздушной среде.
Немного рекламы
Спасибо, что остаетесь с нами. Вам нравятся наши статьи? Хотите видеть больше интересных материалов? Поддержите нас, оформив заказ или порекомендовав знакомым, облачные VPS для разработчиков от $4.99, уникальный аналог entry-level серверов, который был придуман нами для Вас: Вся правда о VPS (KVM) E5-2697 v3 (6 Cores) 10GB DDR4 480GB SSD 1Gbps от $19 или как правильно делить сервер? (доступны варианты с RAID1 и RAID10, до 24 ядер и до 40GB DDR4).
Dell R730xd в 2 раза дешевле в дата-центре Maincubes Tier IV в Амстердаме? Только у нас 2 х Intel TetraDeca-Core Xeon 2x E5-2697v3 2.6GHz 14C 64GB DDR4 4x960GB SSD 1Gbps 100 ТВ от $199 в Нидерландах! Dell R420 - 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB - от $99! Читайте о том Как построить инфраструктуру корп. класса c применением серверов Dell R730xd Е5-2650 v4 стоимостью 9000 евро за копейки?
KioskNews shows a cleaned-up reading view extracted from the publisher’s page — the original always lives on their site, not ours.